Nature 重磅 | 端粒酶样逆转录化身"基因组防御复读机",DRT10三元系统精巧编排细菌抗病毒免疫网络
2026-10-13
Nature 重磅 | 端粒酶样逆转录化身"基因组防御复读机",DRT10三元系统精巧编排细菌抗病毒免疫网络
-
全新系统鉴定:发现细菌新型三元抗病毒系统DRT10,由逆转录酶(RT)、非编码RNA(ncRNA)与SLATT效应蛋白组成,三者共同介导广谱噬菌体防御。 -
机制范式统一:揭示ncRNA上A-B-A'序列模体驱动的蛋白引物式串联重复DNA合成机制,证明这是Class 2类DRT的通用作用逻辑。 -
结构突破:冷冻电镜解析出2:1比例的RT-ncRNA伪对称复合物,发现两个RT单体功能不对称,分别负责合成长产物与短流产物。 -
进化溯源:系统发育分析证实细菌DRT家族与真核端粒酶TERT起源于共同祖先,改写了逆转录酶的进化路径认知。
-
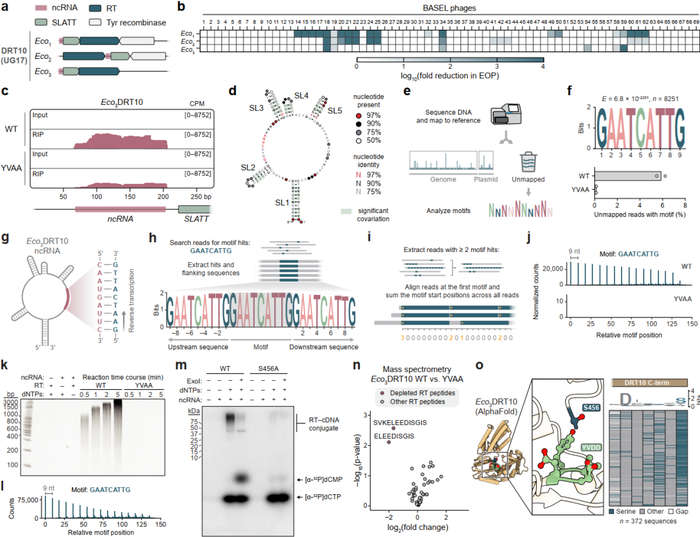
3种DRT10同源系统均能为大肠杆菌提供强效的广谱噬菌体防御;RT催化核心位点突变(YVDD→YVAA)或敲除SLATT蛋白后,防御活性完全丧失;而敲除附近的酪氨酸重组酶则无影响,证明RT与SLATT是防御功能的核心。
-
RIP-seq鉴定到一条长度为137 nt的ncRNA,其二级结构包含5个保守茎环(SL1-SL5);关键茎环的序列打乱会显著削弱甚至完全废除噬菌体防御,证实ncRNA也是系统必需组分。
-
由此正式确立DRT10是RT-ncRNA-SLATT三元组成的新型细菌免疫系统,对应论文图1。
-
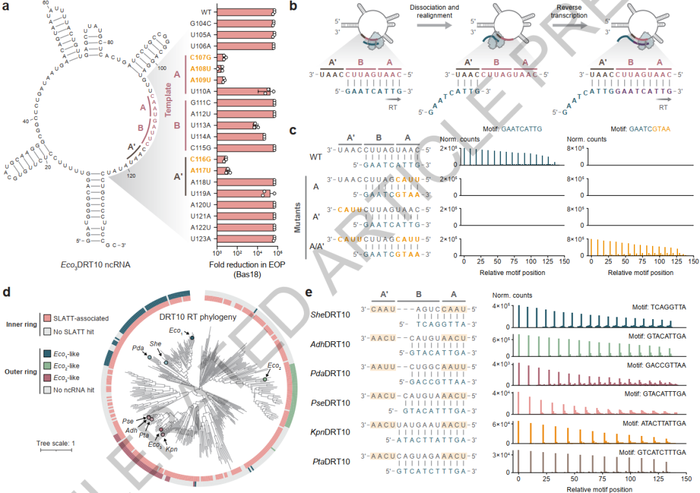
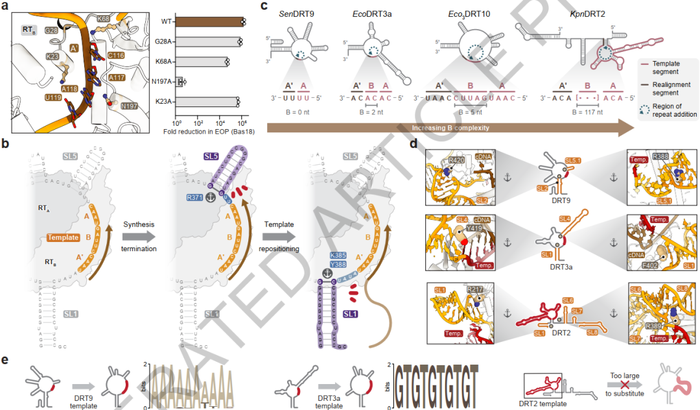
测序发现野生型DRT10菌株中大量存在9 nt的串联重复DNA序列,与ncRNA上的一段序列完全匹配,且重复数可达15次以上;催化失活突变株中则检测不到该产物。
-
进一步发现ncRNA模板区存在保守的A-B-A'序列模式:A是模板5'端序列,B是核心模板区,A'是模板下游的同源重复序列。据此提出循环合成模型:逆转录从蛋白引物启动,沿A-B模板合成至5'边界后,新生cDNA解离并通过A-A'微同源重退火,启动下一轮合成,每轮增加一个重复单元。
-
突变验证:单独突变A或A'会完全阻断重复合成,同时突变A和A'使其互补则能恢复重复合成,且重复序列随突变同步改变;在372个DRT10同源系统中,A-B-A'模体普遍存在,证明机制高度保守,对应论文图2。
-
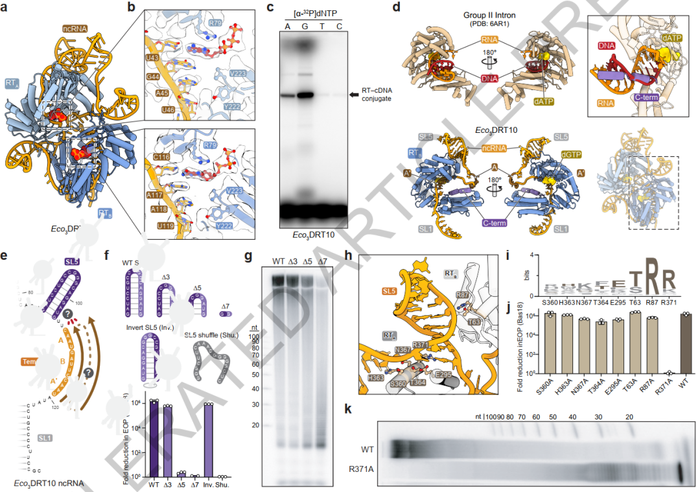
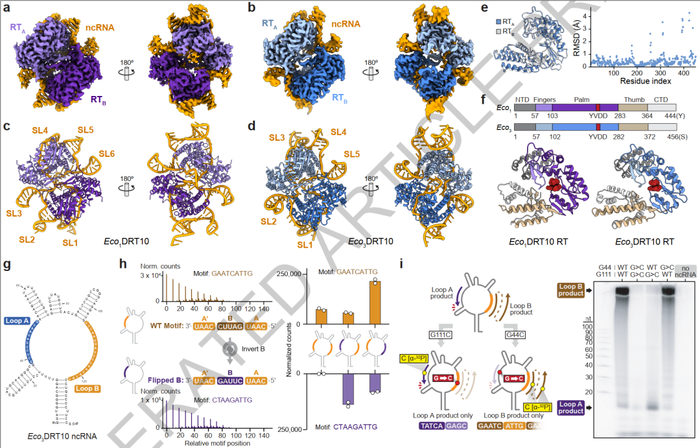
结构呈现出乎意料的2:1组装模式:2个RT单体结合在同一条ncRNA的两侧,围绕ncRNA的中心轴形成伪对称结构;两个RT单体的构象高度相似(RMSD仅0.72 Å),没有明显的活性态/非活性态区分。
-
功能上存在天然不对称:ncRNA的Loop B侧带有完整A-B-A'模体,对应RT合成长链串联重复产物;另一侧Loop A缺少功能模体,对应RT仅产生~10 nt的短流产产物。
-
人工给两侧都装上功能A-B-A'模体后,复合物可同时合成两种不同序列的串联重复DNA,且不会发生模板间的跳跃嵌合,证明每轮合成都严格限定在单侧模板上,对应论文图3。
-
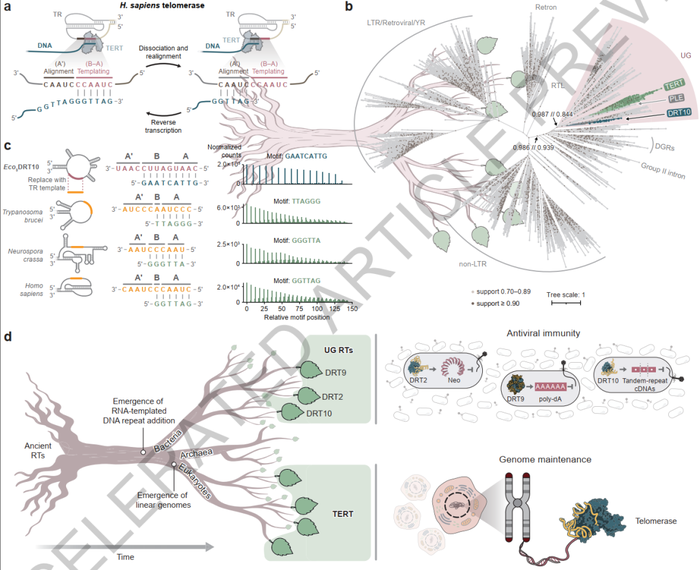
系统发育分析显示,真核端粒酶TERT、Penelope样逆转座子(PLE)与细菌UG类逆转录酶(含DRT家族)共同形成一个单系进化支;其中TERT与Class 2类DRT的亲缘关系,比与其他真核逆转录酶更近。
-
功能兼容性验证:将DRT10 ncRNA的模板区替换为人类、锥虫、真菌的端粒酶RNA模板,都能精准合成对应物种的端粒重复序列;甚至在人类HEK293T细胞中共表达DRT10 RT与嵌合ncRNA,也能高效合成人源端粒DNA。
-
这一结果直接证明,端粒酶的核心工作机制早在原核生物中就已成型,细菌的抗病毒系统是真核端粒维持机制的进化前身,对应论文图6。
-
合成生物学:可编程串联重复DNA合成工具
-
优化方法:改造DRT10 ncRNA的A-B-A'模板区序列,定制目标重复单元。 -
具体成果:可精准合成任意序列的单链串联重复DNA,替换为DRT9模板可合成poly-dA,替换为端粒模板可合成TTAGGG重复,序列可编程性强,产物长度可达kb级。 -
机制验证:RT与模板区几乎无序列特异性相互作用,仅通过两侧茎环的几何结构锚定边界,为模板替换提供了结构基础。
-
优化方法:靶向DRT10的关键功能位点(蛋白引物残基S456、边界锚定残基R371)。 -
具体成果:S456A或R371单点突变可使细菌噬菌体防御效率下降100倍以上,完全丧失对噬菌体的抵抗力。 -
机制验证:两类位点在DRT10家族中高度保守,是系统功能的核心刚需位点,可作为广谱抗菌增敏靶点。 -
机制验证
-
优化方法:基于DRT10构建非天然端粒延伸系统,绕过天然端粒酶的调控通路。 -
具体成果:在人类细胞中成功实现端粒重复序列的高效合成,无需内源TERT与端粒酶RNA的参与。 -
验证:DRT10可利用DNA引物启动合成,兼容真核细胞环境,为端粒缩短相关的衰老、罕见病研究提供了新的工具路径。
-
技术简化创新:开发的miniprep-seq方法,仅用常规质粒提取结合高通量测序即可鉴定细菌逆转录产物,相比传统cDIP-seq操作更简便、成本更低,适合大规模筛选新型DRT系统。 -
分析方法范式:建立的"基序位置图"(motif position graph)分析方法,可定量表征串联重复核酸的周期性、长度与纯度,为重复序列类核酸研究提供了标准化的分析框架。 -
研究逻辑链条:从生物信息学预测→体内功能验证→生化机制拆解→原子结构解析→进化溯源验证的完整闭环,为微生物新型免疫系统的发掘与机制研究提供了经典范本。
-
解析DRT10下游免疫激活的完整通路,明确重复核酸与效应蛋白的互作模式; -
挖掘更多未知DRT家族成员,拓展逆转录酶的功能多样性; -
工程化改造DRT系统,开发可编程DNA合成工具,应用于合成生物学、端粒治疗等场景。
网络
展源
何发
热点文章
-
管制范围持续扩张!美国更新“1286 ”清单,复旦、上交等上榜
2026-07-30
-
快讯!赛默飞任命Dan Rosen为中国区总裁
2026-08-18
-
2026 国自然集中接收项目评审结果放榜,多项资助规模上调
2026-08-26
-
哈工大谭久彬院士团队合作发明化学反应发光超分辨成像新方法
2026-08-14
-
安捷伦洞察检测需求,共建高效实验室市场调研
2026-09-01
-
多孔材料表征|深度解读比表面积、孔径分布与吸脱附等温线
2026-07-17
-
评论
加载更多